 egghead
Filozofia
Czy entropia to cel życia? Co entropia mówi i czego nie mówi o organizmach
Druga zasada termodynamiki mówi, że entropia izolowanego układu nie maleje. Nie wynika z niej jednak, że każdy układ powinien maksymalizować tempo produkcji entropii ani że życie jest kosmicznym narzędziem do rozpraszania energii. Co rzeczywiście pokazują modele i eksperymenty dotyczące samoorganizacji w układach nierównowagowych, takich jak te tworzone przez żywe organizmy?
Jak organizm utrzymuje porządek, zwiększając entropię otoczenia
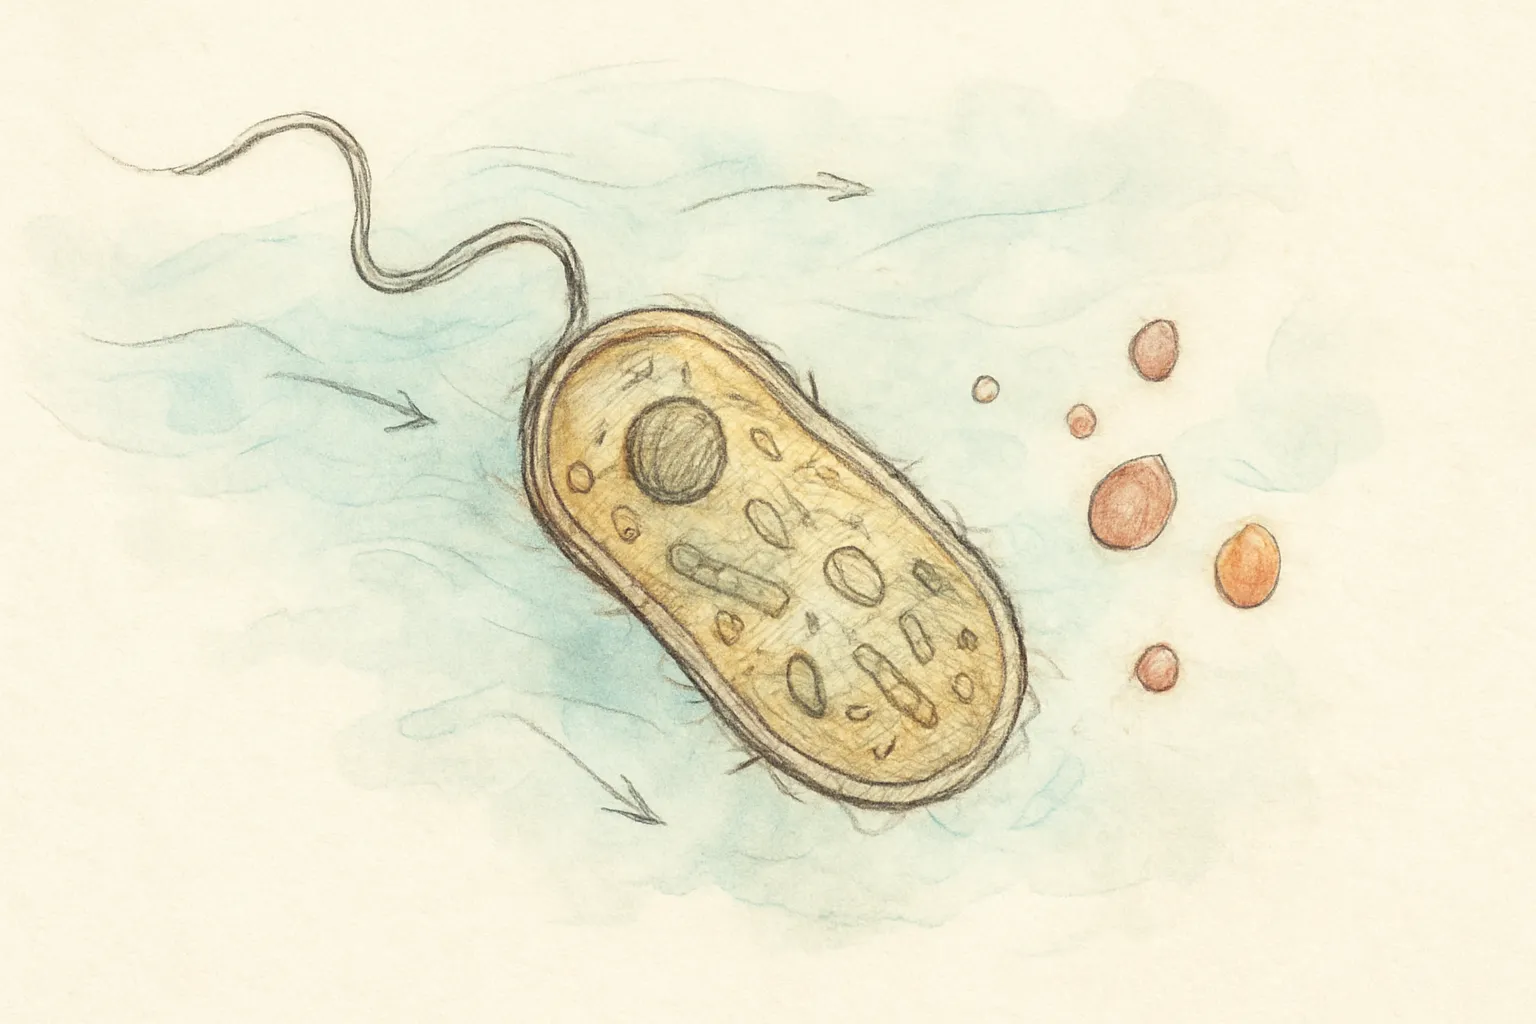
Organizm utrzymuje lokalną organizację dzięki przepływowi energii i materii. Pobiera energię swobodną, wykorzystuje ją do budowy oraz naprawy własnych struktur, a część energii oddaje otoczeniu w postaci ciepła i produktów przemian. Bilans całego układu, obejmującego organizm i środowisko, pozostaje zgodny z drugą zasadą.
Metabolizm wyjaśnia, jak życie może trwać z dala od równowagi. Samoorganizacja może opisywać powstawanie albo utrzymywanie się pewnych struktur. Samoreplikacja dodaje możliwość zwiększania liczby ich kopii, a dziedziczenie i zmienność są potrzebne, by mówić o ewolucji biologicznej. Te poziomy trzeba rozdzielać.
Praca Skinnera i Dunkela rozwija metodę wyznaczania dolnych ograniczeń produkcji entropii na podstawie częściowych obserwacji. Autorzy zastosowali ją między innymi do silników wici bakteryjnych, rosnących mikrotubul i oscylacji wapniowych w komórkach HEK. Wynik pozwala ilościowo opisywać koszt utrzymywania procesów biologicznych. Nie pokazuje, że organizmy maksymalizują produkcję entropii.
Druga zasada nie mówi: „maksymalizuj entropię”
Dla izolowanego układu druga zasada termodynamiki wyraża warunek dS/dt \geq 0. Entropia może rosnąć albo, po osiągnięciu równowagi, pozostawać stała. Z samego tego warunku nie wynika, że tempo wzrostu powinno być największe z możliwych. Jeśli a>0, oba przebiegi S_A(t)=S_0+at i S_B(t)=S_0+2at są zgodne z drugą zasadą, choć drugi oznacza szybszą produkcję entropii.
To rozróżnienie oddziela ustaloną zasadę od hipotezy maksymalnej produkcji entropii, znanej jako MEPP. Pierwsza opisuje kierunek przemian w określonych warunkach. Druga zakłada, że w pewnych układach nierównowagowych preferowane mogą być stany lub procesy wytwarzające entropię szczególnie szybko. MEPP jest narzędziem modelowania i przedmiotem dyskusji, a nie prostym przepisaniem drugiej zasady. Zastosowanie tych pojęć do całego Wszechświata wymaga dodatkowego modelu kosmologicznego. Sama nierówność dS/dt \geq 0 nie dowodzi, że życie jest potrzebne do dalszego wzrostu entropii.
Co pokazują modele i eksperymenty z układami nieożywionymi
Modele Perunova, Marslanda i Englanda opisują stochastyczną ewolucję materii napędzanej zewnętrzną energią. W określonych klasach układów konfiguracje, które niezawodnie pochłaniają i rozpraszają dostarczaną pracę, mogą być częściej odwiedzane lub trwalsze. Znaczenie mają jednak także fluktuacje, drogi przejścia i sposób napędzania. Nie działa tu prosta reguła „więcej ciepła oznacza większe prawdopodobieństwo”.
W symulacji Horowitza i Englanda losowo połączona sieć reakcji chemicznych otrzymywała silne wymuszenie tylko przy rzadkich kombinacjach stężeń. Długookresowa dynamika sprzyjała stanom dostrojonym do tych źródeł napędu. Model pokazuje, że mechanizm samoorganizacji jest możliwy bez samoreplikacji i doboru naturalnego.
Inny mechanizm ujawnił eksperyment Teny-Solsony i współautorów. W zasilanej cyklicznie sieci reakcji chemicznych niektóre produkty tworzyły krople oddzielone fazowo. Kompartmentalizacja chroniła je przed rozpadem, więc przy kolejnych cyklach zasilania i głodzenia stawały się liczniejsze oraz trwalsze. W tym przypadku bezpośrednią przewagę zapewniała przede wszystkim ochrona przed deaktywacją. Doświadczenie dotyczyło układu chemicznego, a nie organizmu, ale wskazuje kierunek w poszukiwaniu możliwych dowodów na maksymalizacji produkcji entropii.
Od możliwego mechanizmu do teorii życia jest daleka droga
Największy problem polega na tym, że „preferowanie” może oznaczać różne rzeczy: większą chwilową produkcję entropii, większą sumę rozproszonej energii, dłuższe trwanie albo częstsze odwiedzanie danego stanu. Te wielkości nie są równoważne. Większa dyssypacja może towarzyszyć strukturze, ale nie musi być przyczyną jej powstania.
Termodynamika narzuca koszt samoreplikacji. Nie wynika z tego, że większa produkcja entropii zwiększa prawdopodobieństwo pojawienia się replikatora ani że ewolucja zawsze wybiera rozwiązania rozpraszające energię najszybciej. Potrzebne byłyby testy przyczynowe, ilościowe przewidywania oraz porównania z równie realistycznymi strukturami nieożywionymi. Trzeba także pokazać przejście od samoorganizacji do dziedziczenia i otwartej ewolucji.
Najuczciwsza wersja hipotezy brzmi warunkowo: przepływ energii może w określonych układach sprzyjać powstawaniu i utrzymywaniu struktur, które skutecznie ją rozpraszają. Życie może być szczególnym przypadkiem takiej dynamiki, lecz dostępne modele nie pokazują powstania organizmów. Fizyka opisuje warunki sprzyjające procesom, nie dosłowny cel życia ani kosmiczną konieczność jego pojawienia się.